エネルギー代謝を「都市のエネルギー供給システム」として考えてみよう
エネルギー代謝には、解糖系、TCA回路、酸化的リン酸化、脂肪酸のβ酸化、脂肪酸合成、グリコーゲン代謝など、たくさんの経路が登場します。一つずつ名前を覚えようとすると、とても複雑に感じます。そこで、まずは体を一つの都市として考えてみましょう。この都市ではグルコースや脂肪酸が「燃料」に相当します。そして燃料から取り出したエネルギーを、最終的にATPという細胞が使える形に変換しています。
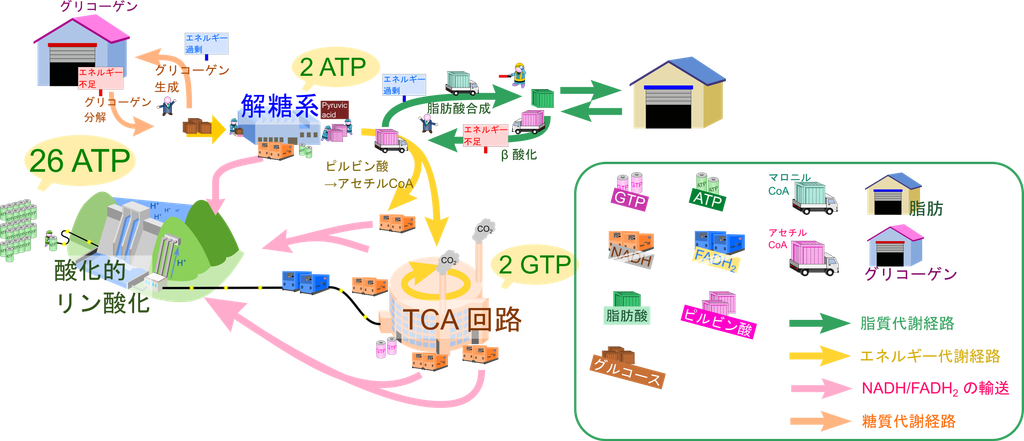
図を見ると、いくつもの工場や倉庫があります。中央にあるのが解糖系とTCA回路です。そして左下にある大きなダムが酸化的リン酸化です。一方、上部にはグリコーゲンと脂肪の倉庫があります。エネルギーが余っているときには燃料を倉庫へ運び、エネルギーが不足すると倉庫から燃料を取り出します。つまりエネルギー代謝とは、単なる「ATPを作る仕組み」ではありません。燃料を使う・貯める・取り出すという、体全体のエネルギー需給を調節するシステムなのです。
ATPは「エネルギーの通貨」
細胞が直接利用する代表的なエネルギー媒体が ATP(アデノシン三リン酸)です。ATP が加水分解されて ADP と無機リン酸などになる反応は自由エネルギーを放出し、そのエネルギーをさまざまな反応に利用することができます。そのためATPはしばしば、「生体のエネルギー通貨」と呼ばれます。このことは都市でガソリンや石炭をそのまま家庭の電化製品に入れないのと同じです。グルコースや脂肪酸は大量のエネルギーを持った燃料ではあるのですが、そのエネルギーを細胞内で使いやすいATPへ変換して利用しています。
ATP が高エネルギー分子となる理由
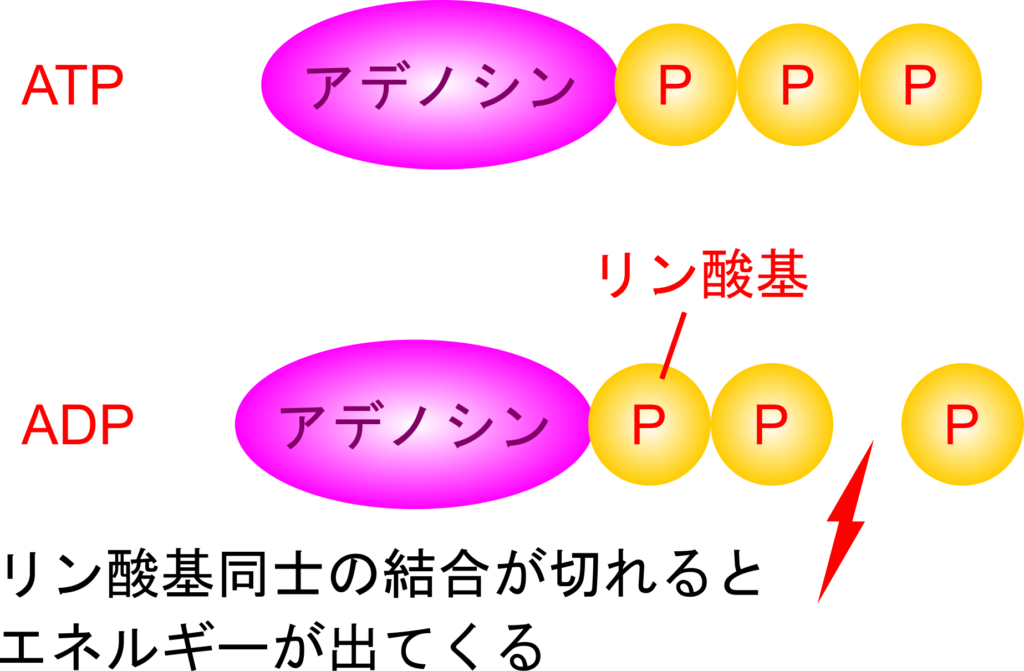
せっかくエネルギーを生み出しても、そのエネルギーを利用しやすい形で受け渡す仕組みがなければ、細胞はうまく利用することができません。そこで重要になるのが ATP です。ATP には三つのリン酸基が連なって結合しています。これらのリン酸基は負に荷電しているため互いに反発しており、ATPは比較的不安定な状態にあります。ATPから末端のリン酸基が外れてADPと無機リン酸になると、リン酸基どうしの反発が弱まるだけでなく、生成した分子がより安定な状態になります。そのため、この反応に伴って利用可能なエネルギーが放出されます。細胞はこのエネルギーをさまざまな反応に利用しています。このようにATPは、エネルギーを一時的に受け取り、必要な場所へ受け渡す「エネルギーの仲介役」として働いています。
ミトコンドリアの構造
エネルギー代謝は細胞質とミトコンドリアで行われます。特にミトコンドリアは効率の高いエネルギー産生を行っている、エネルギー生産工場のような役割を担っています。ここでは、ミトコンドリアの構造についてみていきましょう。ミトコンドリアは細胞質とミトコンドリアを隔てる外膜、その内側に内膜があります。内膜に囲まれた領域はマトリックスと呼ばれ、内膜と外膜の間にある領域は膜間腔と呼ばれます。内膜は複雑に折りたたまれた構造をしており、このひだ状の構造をクリステといいます。なお、外膜は小さな分子やイオンは通過しやすくなっていますが、内膜を跨いだ物質の移動はトランスポーターなど物質を運ぶ役割を担うタンパク質が制御しています。

グルコースからATPを作る3段階
グルコースから効率よくATPを作るときには、大きく分けて、
- 解糖系(系の場所:細胞質)
- TCA サイクル(系の場所:ミトコンドリアのマトリックス)
- 酸化的リン酸化(系の場所:ミトコンドリアの内膜)
という流れを利用します。これら3つの経路の役割はかなり異なります。
解糖系―すぐに使える小さなエネルギー工場
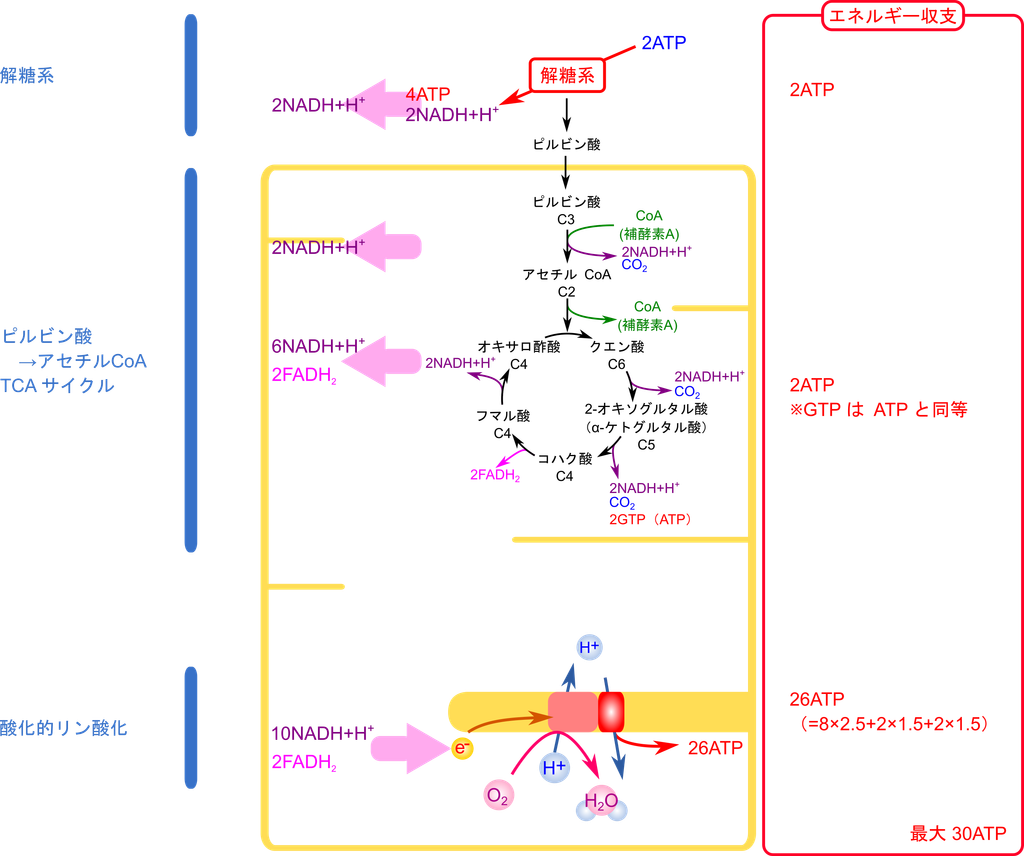
解糖系は細胞質で進みます。解糖系ではグルコール(炭素6個)の化合物をちょうど半分で切り分けて、グリセルアルデヒド-3-リン酸 2 分子(炭素3個)を生成して最終的にピルビン酸(炭素3個)2分子に代謝します。前半では ATP 2分子を消費しますが、後半ではグリセルアルデヒド-3-リン酸 1 分子から 2 分子の ATP が生成され、グルコース1分子からは合計で 4 分子の ATP が生成されることになります。つまり、差し引き2 ATP を得ることができます。2 ATPという量は、このあと説明する酸化的リン酸化と比べると多くありません。
しかし解糖系には大きな長所があります。酸素を直接必要とせず、すばやくATPを供給できることです。したがって解糖系は、都市に例えるなら、発電量は少ないけれど、必要なときにすぐ動かせる発電設備と考えると分かりやすいでしょう。

TCA回路―燃料からエネルギーを取り出すリサイクル工場
解糖系で作られたピルビン酸は、ミトコンドリアに入り、アセチルCoAへ変換されます。このアセチルCoAから、アセチル基(C2)がオキサロ酢酸(C4)に渡されてクエン酸(C6)となり、TCA回路へ入ります。TCA回路ではアセチル基として入ってきた炭素を含む炭素骨格が段階的に酸化されていき、最終的に CO₂ として放出されますが、その過程でエネルギーが段階的に取り出されます。ただし、TCA 回路が大量の ATP を直接作るわけではありません。
重要なのが、NADH、FADH₂ です。TCA回路では燃料から高エネルギー電子を抜き取って、これらの分子へ受け渡します。今回の都市の比喩なら、NADH や FADH₂ は、燃料から取り出したエネルギーを発電所へ受け渡す媒体(大型バッテリー)と考えるとよいでしょう。

酸化的リン酸化―大量のATPを作る巨大発電所
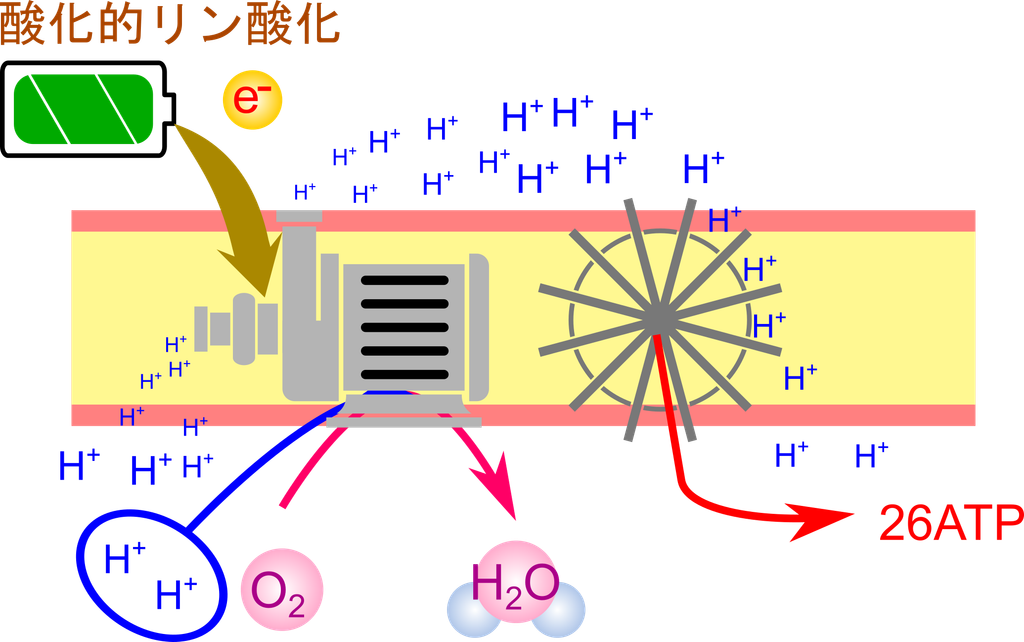
そして大量のATPを作るのが酸化的リン酸化です。今回の図では、これをダム式水力発電所として表現しています。NADHやFADH₂から受け取った電子が電子伝達系を流れると、そのエネルギーを利用してポンプが水をくみ上げるように、H⁺がミトコンドリア内膜の片側へ汲み出されます。これは水をダムの上流へ汲み上げているような状態です。大量に集まった H⁺ は元の場所へ戻ろうとします。そこで H⁺ を ATP合成酵素 に通します。ATP合成酵素は、いわば水力発電所のタービンであり、H+ が流れるエネルギーを利用して回転し、ADP にリン酸基を付加して ATP に変換します。
H⁺が流れるエネルギー
↓
ATP合成酵素が回転
↓
ATPを合成
という仕組みになっています。この過程では電子を最終的に受け取る物質として酸素が必要です。酸素は電子を受け取ると還元されて H2O に変換されます。
グルコース1分子からどのくらいATPを作れる?
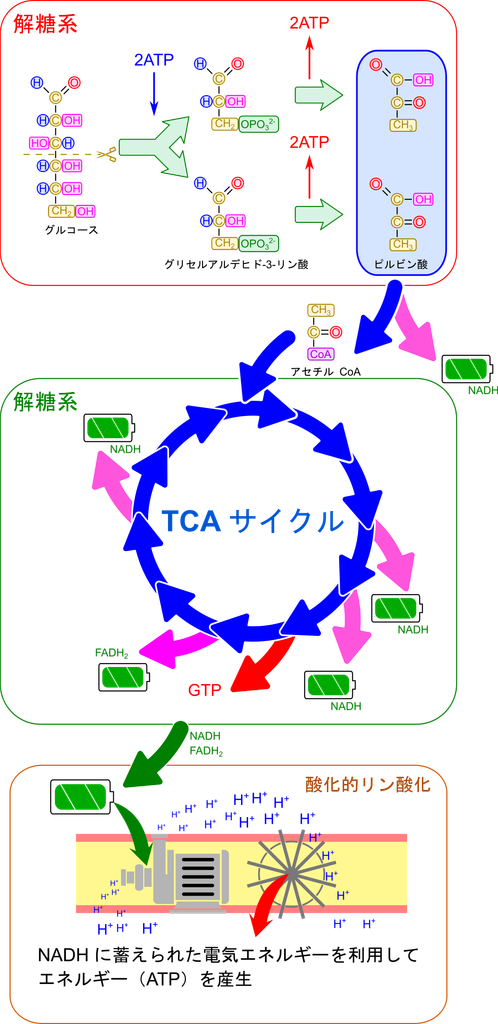
ここまでをまとめてみましょう。
グルコース1分子から合成される各分子を見てみましょう。
解糖系では 2ATP を消費しますが、4ATP が産生されるため全体では 2ATP が産生され、他に NADH が 2 分子産生されます。
ピルビン酸→アセチル CoA の反応では2分子の NADH が産生されます。TCA サイクルでは6分子の NADH、2分子の FADH2、2分子の GTP が産生されます。GTP は ATP と同等ですので、2分子の GTP は2分子の ATP と同じことです。
以上の分子数をまとめる以下の通りです。
- ATP:4分子
(解糖系 2 ATP + TCA 回路 2 GTP) - NADH:10分子
(内 2 分子は解糖系由来) - FADH2:2分子
各経路で産生された NADH と FADH2 から酸化的リン酸化で変換される ATP は、それぞれ 2.5 ATP、1.5 ATP に相当します。ただし、解糖系から供給される NADH については 1.5 ATP に相当することになります。
少し難しい話になりますが、解糖系は細胞質で、酸化的リン酸化はミトコンドリア内で行われます。したがって解糖系で生成された NADH が持つ電子を、ミトコンドリア膜を超えて伝達する必要があります。この過程の結果、これらの電子は酸化的リン酸化の途中から合流することになります。一方、TCA 回路から供給される電気エネルギーは酸化的リン酸化の最初から利用されるので、この差が ATP の産生量の差になることになります(難しいと感じる場合は NADH の電気エネルギーを輸送する関係で 1.5 ATP になると思ってください)。
このことから計算すると、グルコース1分子から産生される ATP は以下の通りです。
4 ATP + 8 (NADH+H+) × 2.5 + 2 (NADH+H+) × 1.5 + 2 FADH2 × 1.5 = 30 ATP
つまり、「解糖系だけでもATPは作れる。しかし、酸素を利用してTCA回路と酸化的リン酸化まで利用すると、はるかに効率よくエネルギーを取り出せる。」ということです。
エネルギーが余ったらどうする?―燃料を倉庫へ貯める
ここまでは「燃料を使う」話でした。しかし、私たちは食事をした直後に食物のエネルギーをすべて使い切るわけではありません。余ったエネルギーは、あとで利用できるように保存します。代表的な貯蔵方法が、以下の二つです。
- グリコーゲン
- 脂肪
グルコースをグリコーゲンとして貯める
食後など、グルコースが十分に存在すると、その一部はグリコーゲンとして貯蔵されます。グリコーゲンは多数のグルコースがつながった分子です。今回の図では、グルコースを箱に詰めてグリコーゲン倉庫へ運ぶイメージです。特に肝臓と骨格筋が主要なグリコーゲン貯蔵場所になります。反対にエネルギーが不足すると、グリコーゲンを分解して再び利用します。
さらに余ったエネルギーは脂肪として貯める
グリコーゲンとして貯められる量には限りがあります。そこで長期的なエネルギー貯蔵に利用されるのが脂肪です。グルコースから作られたピルビン酸はアセチル CoA へ変換できます。エネルギーが十分に存在すると、アセチル CoA はエネルギー産生だけでなく、脂肪酸合成にも利用されます。脂肪酸合成に利用されるとき、アセチル CoA は CO2 を付加されてマロニル CoA が作られ、これらを材料として脂肪酸が合成されます。脂肪酸は最終的にトリアシルグリセロールなどの形で脂肪組織に蓄えられます。都市でいえば、今すぐ必要のない燃料を、大きな長期備蓄倉庫へ運んでいるようなものです。
食べられなくなったら?―体は「備蓄モード」から「取り崩しモード」へ
ここからがエネルギー代謝のおもしろいところです。食事からグルコースが供給されなくなっても、私たちはすぐに活動できなくなるわけではありません。体内に蓄えておいた燃料を取り出すからです。空腹が続くと、代謝は次第に「エネルギーを貯める」から「貯めていたエネルギーを使う」方向へ切り替わります。まずグリコーゲンが利用されます。同時に脂肪組織に蓄えられていたトリアシルグリセロールが分解され、脂肪酸とグリセロールが放出されます。脂肪酸はさまざまな組織へ運ばれ、β 酸化によってアセチル CoA へ分解されます。アセチル CoA は TCA 回路などで利用できるため、脂肪は非常に大きなエネルギー備蓄になります。
それでもグルコースを必要とする組織がある
では脂肪を大量に蓄えておけば、空腹時にはすべて脂肪を使えばよいのでしょうか。そう単純ではありません。体内には、グルコースへの依存度が高い組織や細胞があります。特に赤血球はエネルギー源としてグルコースしか利用できず、脳も通常はグルコースを主要な燃料として利用しています。そのため食物からグルコースが入ってこなくても、一定量のグルコースを供給し続ける仕組みが必要です。そこで登場するのが糖新生です。
糖新生―グルコースを新しく作る
糖新生(gluconeogenesis)は、その名前のとおり、糖ではない材料からグルコースを新しく作る仕組みです。主に肝臓で行われ、飢餓が長くなると腎臓も重要になります。材料として利用される代表例が、ピルビン酸、乳酸、グリセロール、糖原性アミノ酸です。例えば筋肉などで作られた乳酸は肝臓へ運ばれ、グルコースの材料として再利用できます。脂肪が分解されたときに生じるグリセロールも、さらにタンパク質の分解によって生じた一部のアミノ酸も、ピルビン酸やTCA回路の中間体などを経由してグルコース合成に利用できます。つまり食物からグルコースが入ってこなくても、体内にある材料を集めてグルコースを作り直すことができるのです。
長い飢餓では「ケトン体」という新しい燃料が登場する
飢餓状態では脂肪酸のβ酸化が活発になり、肝臓で大量のアセチルCoAが作られます。ところが同時に、糖新生を維持するためにTCA回路の中間体であるオキサロ酢酸などが利用されます。その結果、増えたアセチルCoAをすべてTCA回路で処理することが難しくなります。そこで肝臓はアセチルCoAから、
アセト酢酸
β-ヒドロキシ酪酸
などのケトン体を作ります。ケトン体は血液を通って他の組織へ運ばれ、再びアセチルCoAへ変換されてエネルギー産生に利用されます。都市の比喩なら、脂肪倉庫から取り出した燃料を、遠くの施設でも利用できる「非常用燃料」に加工して配送するようなものです。
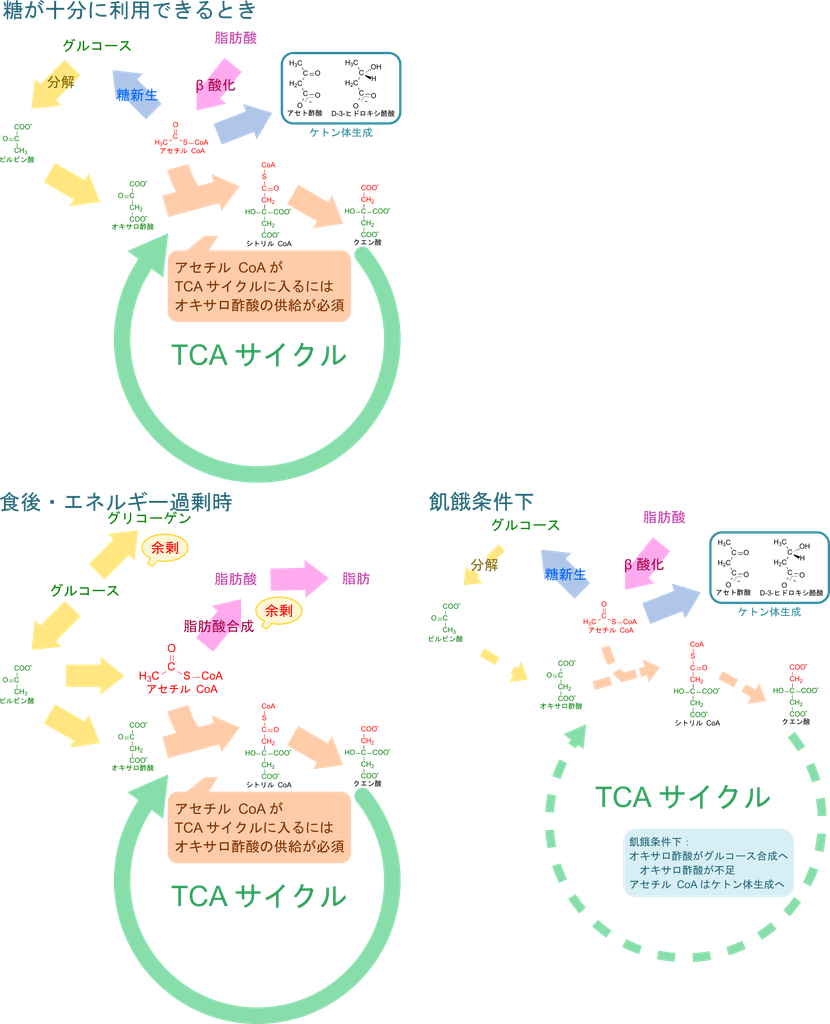
食後など、エネルギーが過剰な状況では、アセチル CoA が脂肪酸合成に利用され、合成された脂肪酸はグリセロールと結合して脂肪として脂肪組織に蓄積されます。一方で、グルコースはグリコーゲン合成に利用され、貯蓄されます。
一方、飢餓条件下では脂肪酸のβ酸化によってアセチル CoA が大量に供給されますが、グルコース不足のためオキサロ酢酸の供給が減少します(黄色破線矢印)。さらに、残り少ないオキサロ酢酸は糖新生に利用されてグルコース合成へ回されるため(青色矢印)、TCA回路でアセチル CoA を効率よく利用できなくなります(オレンジ破線矢印)。その結果、余剰となったアセチル CoA はケトン体生成に振り向けられ、末梢組織へ供給されます。
エネルギー代謝は「使う・貯める・取り出す」のバランス
ここまでを都市のエネルギーシステムに戻して整理してみましょう。
食後・エネルギーが豊富なとき
グルコース
→ 解糖系
→ アセチルCoA
→ TCA回路
→ NADH/FADH₂
→ 酸化的リン酸化
→ ATP
余った燃料
→ グリコーゲン・脂肪として貯蔵
一方、空腹・飢餓時
グリコーゲン
→ 分解して利用
脂肪
→ 脂肪酸
→ β酸化
→ アセチルCoA
→ エネルギー産生
乳酸・グリセロール・糖原性アミノ酸
→ 糖新生
→ グルコース
大量の脂肪酸
→ アセチルCoA
→ ケトン体
→ 他の組織の燃料
となります。一見すると非常に複雑ですが、基本原理は意外と単純です。
- エネルギーが余っているときには貯める。
- 足りないときには貯蔵していた燃料を取り出す。
- それでもグルコースが必要なら糖新生で作り、長期の飢餓ではケトン体という別の燃料も利用する。
私たちの体は、この切り替えによって食事をしていない時間にもエネルギー供給を維持しています。
エネルギー代謝をさらに詳しく学びたい方へ
この記事では、エネルギー代謝を「都市のエネルギー供給システム」にたとえながら、解糖系、TCA回路、酸化的リン酸化、脂肪の貯蔵と利用、糖新生、ケトン体までを大きな流れとして紹介しました。
エネルギー代謝は、それぞれの経路を詳しく見ていくとさらにおもしろくなります。「なぜこの反応が必要なのか」「どこでエネルギーを取り出しているのか」まで知りたい方は、以下の専門記事もあわせてご覧ください。
- 解糖系に関する記事
解糖系を詳しく解説 - TCA 回路に関する記事
TCA回路の制御と役割 - 電子伝達系と酸化的リン酸化に関する記事
電子伝達系の仕組み
プロトン勾配とATP合成酵素
NADHの電子を運ぶシャトル機構
酸化的リン酸化の概要 - 脂肪酸合成とβ酸化に関する記事
脂肪酸合成の仕組み
飽和脂肪酸のβ酸化
不飽和脂肪酸や奇数鎖脂肪酸のβ酸化 - 糖新生に関する記事
糖新生の仕組み - ケトン体に関する記事
ケトン体の生成と利用
参考文献
- 島原健三 (1991). 概説 生物化学. 三共出版. pp. 139-150
- Jeremy M. Berg, John L. Tymoczko, Gregory J. Gatto Jr., Lubert Stryer著、入村達郎、岡山博人、清水孝雄、中野徹訳 (2018). ストライヤー生化学 第8版. 東京化学同人. pp. 485-519